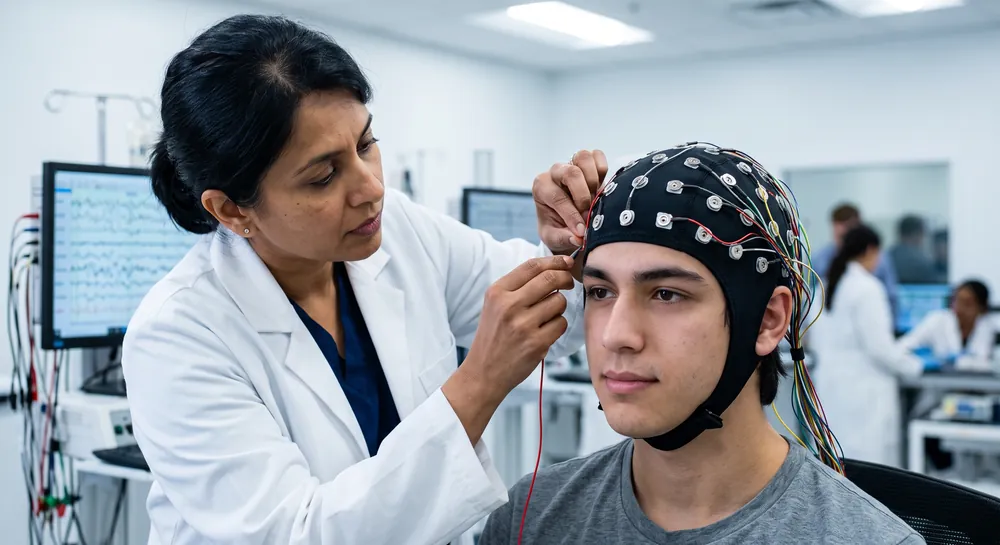
คลื่นทีตา (Theta waves) ซึ่งตามคำจำกัดความทางเทคนิคคือการแกว่งตัวของกระแสไฟฟ้าที่เป็นจังหวะในช่วงความถี่ 4–8 Hz จะปรากฏให้เห็นในบันทึกคลื่นไฟฟ้าสมองผ่านทางหนังศีรษะ (EEG) การบันทึกคลื่นไฟฟ้าสมองภายในกะโหลกศีรษะ (intracranial EEG) และศักย์ไฟฟ้าเฉพาะที่ (local field potentials) คลื่นเหล่านี้มีความเด่นชัดเป็นพิเศษในฮิปโปแคมปัส (hippocampus) ซึ่งเป็นโครงสร้างที่อยู่ลึกเข้าไปในกลีบสมองส่วนขมับ (temporal lobe) ที่ทำหน้าที่เป็นศูนย์กลางสำคัญสำหรับความจำระยะสั้นและระยะยาว (episodic memory) และการนำทางในมิติสัมพันธ์ (spatial navigation)
บทความนี้จะตรวจสอบหลักการของคลื่นทีตาโดยตรง โดยอาศัยหลักฐานที่สอดคล้องกันจากการบันทึกคลื่นสรีรวิทยาไฟฟ้าในสัตว์ฟันแทะ (rodent electrophysiology) และการบันทึกคลื่นไฟฟ้าภายในกะโหลกศีรษะของมนุษย์ เพื่อทำความเข้าใจว่าคลื่นทีตาประสานการทำงานของเซลล์ประสาทที่รองรับการสร้างความจำ การกู้คืนความจำ และการนำทางได้อย่างไร
คลื่นธีตาคืออะไร?
คลื่นธีตา (Theta waves) คือการแกว่งตัวเป็นจังหวะของกิจกรรมทางไฟฟ้าในสมองที่เกิดขึ้นในความถี่ค่อนข้างต่ำ ในมนุษย์ คำนี้มักหมายถึงกิจกรรมในช่วงประมาณ 4–8 Hz แม้ว่าคำนิยามจะแตกต่างกันไปตามงานวิจัย ตำแหน่งที่บันทึก และวิธีการวิเคราะห์ กิจกรรมธีตาจะเปลี่ยนแปลงไปตามการนอนหลับ การเคลื่อนไหว ความสนใจ อายุ และอาณาบริเวณของสมองที่ตรวจพบกิจกรรมนั้น
การแกว่งตัวเหล่านี้ได้รับการศึกษาในสาขาต่างๆ รวมถึงประสาทวิทยาศาสตร์ การวิจัยเรื่องการนอนหลับ จิตวิทยาการรู้คิด และสรีรวิทยาประสาททางคลินิก โดยทั่วไปแล้วนักวิจัยจะตรวจสอบคลื่นธีตาในฐานะองค์ประกอบหนึ่งของรูปแบบที่กว้างขึ้น มากกว่าที่จะมองว่าเป็นตัวบ่งชี้เดี่ยวๆ ของความรู้สึกหรือความสามารถเฉพาะอย่างใดอย่างหนึ่ง
ลักษณะเฉพาะของคลื่นธีตา
คลื่นธีตาค่อนข้างช้าและมักจะมีวงจรที่มองเห็นได้ใหญ่กว่าจังหวะที่เร็วกว่าบนกราฟบันทึกเวลา ในการบันทึกภาพจากหนังศีรษะ คลื่นเหล่านี้อาจปรากฏเป็นความผันผวนที่เกิดขึ้นซ้ำๆ แต่การตรวจสอบด้วยสายตาเพียงอย่างเดียวไม่สามารถระบุแหล่งที่มาหรือความหมายของมันได้ การเคลื่อนไหวของดวงตา กิจกรรมของกล้ามเนื้อ ปัญหาของอิเล็กโทรด และการเปลี่ยนแปลงของความตื่นตัว ล้วนส่งผลต่อสัญญาณที่บันทึกได้ทั้งสิ้น
กิจกรรมธีตามีความเกี่ยวข้องกับการทำงานของสมองหลายประเภท มันสามารถเกิดขึ้นร่วมกับการเปลี่ยนผ่านจากภาวะตื่นไปสู่การนอนหลับ ปรากฏขึ้นในระหว่างการนอนหลับช่วง REM และมีส่วนร่วมในการประสานงานที่เกี่ยวข้องกับความทรงจำ โดยเฉพาะอย่างยิ่งในเครือข่ายที่เกี่ยวข้องกับฮิปโปแคมปัส ในผู้ใหญ่ที่ตื่นอยู่ กิจกรรมธีตาที่เพิ่มขึ้นไม่ได้ส่งผลดีหรือผลเสียโดยอัตโนมัติ การแปลผลจำเป็นต้องอาศัยเงื่อนไขในการบันทึกและรูปแบบ EEG ที่เหลือร่วมด้วย
คลื่นธีตาปรากฏบน EEG อย่างไร
EEG บันทึกความต่างศักย์ไฟฟ้าผ่านอิเล็กโทรดที่วางอยู่บนหนังศีรษะ กราฟที่ได้จะมีกิจกรรมจากแหล่งประสาทหลายแห่ง พร้อมด้วยสัญญาณสิ่งประดิษฐ์ที่อาจเกิดขึ้นจากการเคลื่อนไหวของดวงตา กล้ามเนื้อใบหน้า การเคลื่อนไหวของร่างกาย สัญญาณรบกวนทางไฟฟ้า และการเปลี่ยนแปลงในการสัมผัสของอิเล็กโทรด คลื่นธีตาจะถูกระบุโดยการวิเคราะห์เนื้อหาความถี่ของสัญญาณนั้น มากกว่าที่จะพึ่งพาเพียงลักษณะภายนอกของคลื่นแต่ละลูก
นักวิจัยอาจใช้ฟิลเตอร์ การวิเคราะห์สเปกตรัม วิธีเวลา-ความถี่ หรือการวัดการประสานเวลาเพื่อตรวจสอบคลื่นธีตา การแปลผล EEG ขึ้นอยู่กับอัตราการสุ่มตัวอย่าง การเลือกจุดอ้างอิง การวางตำแหน่งอิเล็กโทรด การแก้ไขสิ่งประดิษฐ์ และความยาวของเซกเมนต์ที่บันทึก การตัดสินใจทางเทคนิคเหล่านี้สามารถเปลี่ยนปริมาณและการกระจายตัวของกิจกรรมในแถบความถี่ที่ปรากฏได้
สเปกตรัมความถี่แบบดั้งเดิมสามารถแสดงให้เห็นว่ามีพลังงานสัญญาณอยู่ใกล้ช่วงธีตามากน้อยเพียงใด แต่อาจปิดบังเวลาที่เกิดการปะทุขึ้นในช่วงสั้นๆ สำหรับสัญญาณที่เกิดขึ้นชั่วคราวหรือมีการเปลี่ยนแปลง การวิเคราะห์เวฟเล็ต สามารถให้ข้อมูลเกี่ยวกับทั้งเวลาและขนาดได้ แม้ว่าจะมีข้อสมมติฐานและข้อจำกัดเช่นกัน การตรวจทานด้วยสายตาและการวิเคราะห์ด้วยการคำนวณเป็นสิ่งที่เสริมซึ่งกันและกัน ไม่สามารถใช้แทนกันได้
ผลการตรวจ EEG จะถูกแปลผลโดยความสัมพันธ์กับอาการ อายุ สถานะของสติ ยา ประวัติการรักษา และผลการตรวจอื่นๆ เมื่อนำไปใช้ในทางคลินิก กิจกรรมธีตาเพียงอย่างเดียวไม่สามารถวินิจฉัยโรคได้ ข้อสรุปทางคลินิกจำเป็นต้องมีขั้นตอนการบันทึกที่เหมาะสมและการแปลผลที่มีคุณสมบัติครบถ้วน
กลไกหลักของการประสานงานของระบบประสาท
เพื่อทำความเข้าใจว่าธีตาจัดระเบียบกิจกรรมของฮิปโปแคมปัสอย่างไร จำเป็นต้องคลี่คลายแนวคิดเชิงกลไกสองประการ ได้แก่ การเข้ารหัสเฟส (phase coding) และการจับคู่ข้ามความถี่ (cross-frequency coupling) ทั้งสองอย่างนี้ขึ้นอยู่กับความเข้าใจที่ถูกต้องว่า "เฟส" หมายถึงอะไรในบริบทนี้
เฟสหมายถึงตำแหน่งของการยิงสัญญาณของนิวรอนภายในวงจรธีตาเดี่ยว วงจรที่สมบูรณ์หนึ่งวงจร จากจุดสูงสุดถึงจุดสูงสุด ครอบคลุม 360 องศาเหมือนวงกลม นิวรอนจะคายประจุที่ตำแหน่งเฉพาะเจาะจงและสม่ำเสมอเมื่อเทียบกับคลื่นที่ดำเนินอยู่ การจัดลำดับเวลาแบบนี้เป็นกรอบการทำงานสำหรับการนำเสนอข้อมูล
การเข้ารหัสเฟส อธิบายว่าเวลาของสไปค์ (spikes) เมื่อเทียบกับเฟสของธีตานั้นมีข้อมูลที่มีความหมายเกี่ยวกับประสบการณ์หรือพฤติกรรมของสัตว์อย่างไร การศึกษาโดย Belluscio และคณะ ที่ตรวจสอบกิจกรรมในพื้นที่ CA1 ของฮิปโปแคมปัสในหนูระหว่างการสำรวจเขาวงกต ได้สาธิตหลักการนี้อย่างแม่นยำ
ผู้วิจัยพบว่าคลื่นธีตาในฮิปโปแคมปัสมีความไม่สมมาตร ซึ่งหมายความว่ารูปร่างของคลื่นนั้นมีข้อมูลเชิงโครงสร้างที่นอกเหนือไปจากคลื่นไซน์ธรรมดา การระบุเฟสของการสไปค์ตามรูปแบบคลื่น แทนที่จะใช้วิธีการประมาณค่าเฟสแบบดั้งเดิม ช่วยให้การประมาณตำแหน่งเชิงพื้นที่ของสัตว์มีความแม่นยำยิ่งขึ้น
รูปทรงที่แท้จริงของคลื่น ไม่ใช่แค่เรื่องของเวลา มีส่วนช่วยในข้อมูลตำแหน่ง การค้นพบนี้จัดกรอบของธีตาใหม่ให้เป็นสัญญาณที่สมบูรณ์ไปด้วยข้อมูล ซึ่งไดนามิกของรูปแบบคลื่นช่วยสนับสนุนการคำนวณเชิงพื้นที่ในฮิปโปแคมปัสโดยตรง
กลไกที่สองคือ การจับคู่ข้ามความถี่ อธิบายถึงการปฏิสัมพันธ์ของการแกว่งตัวในแถบความถี่ที่ต่างกัน โดยเฉพาะอย่างยิ่ง เฟสของธีตาสามารถปรับแอมพลิจูดของการแกว่งตัวของแกมมาที่เร็วกว่าได้
ในการบันทึกข้อมูลฮิปโปแคมปัสของหนูแบบเดียวกัน มีแถบย่อยแกมมาที่แตกต่างกันสามแถบปรากฏขึ้น ได้แก่ แกมมาต่ำ (30–50 Hz), แกมมาความถี่กลาง (50–90 Hz) และแกมมาเร็ว (90–150 Hz บางครั้งเรียกว่าแถบเอปไซลอน) แอมพลิจูดของแต่ละแถบย่อยถูกควบคุมโดยเฟสของธีตา ซึ่งบ่งชี้ว่าธีตามีบทบาทในการจัดระเบียบตามลำดับขั้นเหนือกิจกรรมของวงจรท้องถิ่นที่เร็วกว่า
รูปแบบเฉพาะของการปฏิสัมพันธ์นี้ คือการจับคู่แบบเฟสต่อเฟส (phase–phase coupling) ได้รับการสังเกตอย่างน่าเชื่อถือระหว่างธีตากับตัวแกว่งตัวของแกมมาทั้งแบบช้าและแบบกลาง แต่ไม่พบในแกมมาแบบเร็ว นี่หมายความว่าเฟสของตัวแกว่งตัวนั้นประสานกันที่ความสัมพันธ์ที่สม่ำเสมอ ไม่ใช่แค่เรื่องของแอมพลิจูดเท่านั้น
ผลลัพธ์เหล่านี้บ่งชี้ว่าธีตาและแกมมามีปฏิสัมพันธ์กันในหลายมาตราส่วนเวลาเพื่อควบคุมการจับเวลาการสไปค์ของเซลล์ประสาท ทั้งภายในและข้ามโครงสร้างของสมอง ธีตาทำหน้าที่เป็นโครงร่างเวลาที่ช้ากว่า และแกมมาจะคอยมอบช่องหน้าต่างที่มีความละเอียดสูงกว่าที่ซ้อนอยู่ภายในนั้น
หลักฐานจากการเข้ารหัสความทรงจำในมนุษย์
หลักการเชิงกลไกที่ระบุในสัตว์ฟันแทะพบการแสดงออกเชิงหน้าที่ในความทรงจำของมนุษย์ การบันทึกภาพ EEG ภายในกะโหลกศีรษะ จากอิเล็กโทรดในฮิปโปแคมปัสจำนวน 237 จุดในผู้ป่วยศัลยกรรมประสาท 33 รายที่ทำภารกิจความจำเชิงเหตุการณ์ (episodic memory task) ให้หลักฐานโดยตรง
การค้นพบที่สำคัญมุ่งเน้นไปที่พฤติกรรมของธีตาแบบช้า (slow-theta) ซึ่งแกว่งตัวอยู่ที่ประมาณ 3 Hz ในระหว่างการเข้ารหัสความจำที่ประสบความสำเร็จ การแกว่งตัวของธีตาแบบช้านี้แสดงให้เห็นถึงกำลังไฟฟ้าที่สูงขึ้น
มันไม่ได้มีอยู่เฉยๆ แต่เชื่อมโยงการทำงานกับแกว่งตัวของแกมมา ซึ่งบ่งชี้ว่ากลไกการจับคู่ข้ามความถี่ที่พบในสัตว์ฟันแทะนั้นทำงานในระหว่างการสร้างความทรงจำของมนุษย์ด้วยเช่นกัน ผลลัพธ์เหล่านี้เสนอว่ารูปแบบธีตาแบบช้าในมนุษย์ดูเหมือนจะคล้ายคลึงกับธีตาที่เกี่ยวข้องกับความทรงจำที่สังเกตพบในสัตว์
ยิ่งไปกว่านั้น การแกว่งตัวของธีตาแบบเร็วที่ความถี่ 8 Hz ไม่ได้แสดงรูปแบบการเข้ารหัสความทรงจำแบบเดียวกัน ทั้งธีตาแบบช้าและแบบเร็วแสดงหลักฐานของการซิงโครไนซ์เฟสกับการแกว่งตัวในเปลือกสมองส่วนขมับ (temporal cortex) ซึ่งชี้ไปที่การสื่อสารระหว่างฮิปโปแคมปัสและนีโอคอร์เทกซ์ในระหว่างการประมวลผลความจำ การสื่อสารระหว่างเปลือกสมองและฮิปโปแคมปัสมีแนวโน้มว่าจะขึ้นอยู่กับการประสานงานด้านเวลาที่แม่นยำ และจังหวะธีตาทั้งสองก็มีส่วนร่วมด้วย
อย่างไรก็ตาม ธีตาแบบช้าดูเหมือนจะเข้ามามีส่วนร่วมเป็นพิเศษในระหว่างการทำหน้าที่เข้ารหัสข้อมูลเชิงเหตุการณ์ใหม่ๆ การแบ่งหน้าที่นี้เสนอว่าสิ่งที่นักวิจัยเคยปฏิบัติเสมือนว่าเป็นปรากฏการณ์ธีตาเดียวนั้น แท้จริงแล้วอาจเป็นตัวแทนของกระบวนการสั่นไหวที่แตกต่างกันโดยมีบทบาทที่แยกออกจากกันได้บางส่วน
สิ่งที่น่าสังเกตคือ การบันทึกเหล่านี้มาจากผู้ป่วยศัลยกรรมประสาทที่ได้รับการฝังอิเล็กโทรดเพื่อวัตถุประสงค์ทางคลินิก ซึ่งให้หน้าต่างโอกาสที่หาได้ยากในการเข้าถึงกิจกรรมของฮิปโปแคมปัสโดยตรงในระหว่างการทำงานของกระบวนการรู้คิด การครอบคลุมของอิเล็กโทรดใน 237 จุดช่วยให้นักวิจัยสามารถแยกแยะรูปแบบธีตาทั้งสองนี้ได้อย่างชัดเจน ซึ่งเป็นสิ่งที่ EEG บนหนังศีรษะเพียงอย่างเดียวไม่สามารถแก้ไขได้อันเนื่องมาจากความพร่ามัวเชิงพื้นที่และการลดทอนสัญญาณผ่านกะโหลกศีรษะและชั้นเนื้อเยื่อ
การดึงข้อมูลความจำและการประสานการทำงานในเครือข่ายขนาดใหญ่
การดึงข้อมูลความจำ โดยเฉพาะอย่างยิ่งการระลึกถึงรายละเอียดตามบริบท จะกระตุ้นเครือข่ายที่แผ่ขยายออกไปไกลกว่าฮิปโปแคมปัส การบันทึก EEG–fMRI พร้อมกัน ในระหว่างภารกิจการจดจำแบบระลึกได้-คุ้นเคย (remember–know recognition task) เผยให้เห็นว่าการแกว่งตัวในระดับความถี่ธีตาประสานงานวงจรกระจายตัวนี้อย่างไร
เฉพาะในระหว่างการระลึกได้ ผลของความถี่ต่ำที่ครอบคลุมช่วงธีตา–อัลฟา (4–13 Hz) สัมพันธ์กับการเชื่อมต่อของฮิปโปแคมปัสที่เพิ่มขึ้นกับเปลือกสมองส่วนหน้า (prefrontal cortex) และที่สำคัญคือ สไตรเอตัม (striatum) บริเวณส่วนหน้าประกอบด้วยพื้นที่ทั้งในเปลือกสมองส่วนหน้าด้านในและด้านข้าง ในขณะที่การมีส่วนร่วมของสไตรเอตัมเชื่อมโยงธีตากับโครงสร้างใต้เปลือกสมองที่เกี่ยวข้องกับความสำเร็จในการดึงข้อมูลความจำซ้ำๆ
ความสัมพันธ์ระหว่างผลการแกว่งตัวเหล่านี้กับการเพิ่มขึ้นของการเชื่อมต่อสนับสนุนสมมติฐานที่ว่าการแกว่งตัวความถี่ต่ำทำหน้าที่เป็นกลไกในการผูกมัดการทำงานของฮิปโปแคมปัส เปลือกสมองส่วนหน้า และสไตรเอตัมในระหว่างการระลึกได้ที่ประสบความสำเร็จ ข้อมูลที่กระจายอยู่ตามไซต์ที่อยู่ห่างไกลเหล่านี้จะต้องถูกรวมเข้าด้วยกันเป็นตัวแทนความทรงจำที่สอดคล้องกัน การซิงโครไนซ์เฟสในช่วงธีตา–อัลฟานำเสนอแนวทางที่เป็นไปได้สำหรับการบรรลุการบูรณาการนี้ โดยประสานการสไปค์ข้ามภูมิภาคเพื่อให้สัญญาณไปถึงเป้าหมายปลายน้ำในช่วงเวลาที่เหมาะสมที่สุดของความตื่นตัวของประสาท
อย่างไรก็ดี หลักฐานแสดงให้เห็นว่าผลกระทบจากการสั่นไหวมีความสัมพันธ์กับการเชื่อมต่อที่เพิ่มขึ้น ไม่ใช่ว่าพวกมันเป็นเหตุให้เกิดในลักษณะที่กำหนดตายตัว ความสัมพันธ์นี้ได้รับการยอมรับแล้ว แต่ความเป็นเหตุเป็นผลเชิงกลไกในเครือข่ายมนุษย์ของสาขาประสาทวิทยาศาสตร์ยังคงเป็นเรื่องยากที่จะแสดงให้เห็นโดยตรงเนื่องจากลักษณะทางสถิติของการสร้างภาพในแบบที่ไม่ลุกล้ำร่างกาย
การแกว่งตัวของธีตาในระหว่างการนำทางเชิงพื้นที่
การนำทางเชิงพื้นที่ให้ขอบเขตพฤติกรรมตามธรรมชาติสำหรับการตรวจสอบธีตาในฮิปโปแคมปัส เนื่องจากมีเอกสารงานวิจัยเกี่ยวกับสัตว์ฟันแทะที่เป็นรากฐานเชื่อมโยงธีตากับการเคลื่อนที่ผ่านพื้นที่ การศึกษาในมนุษย์ที่ใช้การบันทึกข้อมูลภายในฮิปโปแคมปัส ทั้งในระหว่างการนำทางในโลกจริงและในโลกเสมือนจริงช่วยปรับปรุงภาพนี้ให้ชัดเจนยิ่งขึ้นอย่างมาก
หลักฐานที่ชัดเจนเกี่ยวกับความเป็นจังหวะ 7–9 Hz ได้รับการรายงานว่าปรากฏในกราฟ EEG ภายในฮิปโปแคมปัสในระหว่างการเคลื่อนไหวทั้งในโลกจริงและเสมือน อย่างไรก็ตาม การแกว่งตัวมักจะเกิดขึ้นที่ความถี่ต่ำกว่าในระหว่างการนำทางในโลกเสมือนเมื่อเทียบกับการนำทางในโลกจริง
ยิ่งไปกว่านั้น การบันทึกข้อมูลในระหว่างภารกิจการนำทางเชิงพื้นที่เสมือนแสดงให้เห็นว่าฮิปโปแคมปัสส่วนหลังแสดงการแกว่งตัวที่เด่นชัดประมาณ 8 Hz และความถี่ที่แน่นอนของการแกว่งตัวเหล่านี้สัมพันธ์กับความเร็วของการเคลื่อนไหว ยิ่งคนเคลื่อนที่ผ่านพื้นที่เสมือนเร็วเท่าใด ความถี่ธีตาในส่วนหลังก็ยิ่งสูงขึ้นเท่านั้น การมอดูเลตความเร็วนี้เชื่อมโยงสัญญาณเหล่านี้โดยตรงกับการคำนวณการนำทางเชิงพื้นที่
ทว่า ฮิปโปแคมปัสส่วนหน้าเล่าเรื่องราวที่แตกต่างออกไปในการศึกษานี้ การแกว่งตัวที่ช้าลงประมาณ 3 Hz ดูเหมือนจะแพร่หลายมากกว่าในภูมิภาคนี้ และความถี่ของพวกมันไม่แปรผันตามความเร็วในการเคลื่อนไหว
การแยกแยะซึ่งมีพื้นฐานมาจากกายวิภาคและพฤติกรรมนี้ เสนอแนะถึงความเชี่ยวชาญเฉพาะด้านตามหน้าที่การทำงาน ธีตาแบบเร็วอาจเป็นเรื่องของเชิงพื้นที่ ซึ่งปรับให้เข้ากับความเร็วของการเคลื่อนที่และจำกัดพื้นที่อยู่ที่ฮิปโปแคมปัสส่วนหลัง ส่วนธีตาแบบช้าอาจสะท้อนถึงกระบวนการรู้คิดที่ไม่ใช่เชิงพื้นที่ ซึ่งกระจุกตัวอยู่ทางด้านหน้า
ธีตาเดียวหรือการแกว่งตัวที่หลากหลาย?
หลักฐานที่เกิดขึ้นใหม่สอดคล้องกันสู่มุมมองที่ปรับปรุงใหม่เกี่ยวกับสรีรวิทยาไฟฟ้าของฮิปโปแคมปัสในมนุษย์ แทนที่จะเป็นการแกว่งตัวของธีตาในฮิปโปแคมปัสเพียงครั้งเดียวโดยมีบทบาททั่วไปเพียงอย่างเดียว โครงสร้างกลับสร้างการแกว่งตัวที่หลากหลายซึ่งครอบคลุมประมาณ 2–14 Hz
สิ่งเหล่านี้ไม่ใช่ความผันแปรแบบสุ่มรอบๆ ความถี่ส่วนกลาง พวกมันแสดงการกระจายทางกายวิภาคที่แตกต่างกัน ความสัมพันธ์ทางพฤติกรรมที่ชัดเจน และความสัมพันธ์ที่แยกออกจากกันได้กับการทำงานของกระบวนการรู้คิด
ธีตาแบบช้า ประมาณ 3 Hz เชื่อมโยงเป็นพิเศษกับการเข้ารหัสความจำ โดยจะครอบคลุมในฮิปโปแคมปัสส่วนหน้าและไม่ติดตามความเร็วการเคลื่อนที่ ส่วนธีตาแบบเร็ว ประมาณ 8 Hz เชื่อมโยงกับการนำทางเชิงพื้นที่ กระจุกตัวในฮิปโปแคมปัสส่วนหลัง และปรับขนาดความถี่ตามความเร็วการเคลื่อนไหว
จากการศึกษาในหลายโครงการ หัวข้อเชิงกลไกยังคงสอดคล้องกัน ธีตาจัดระเบียบกิจกรรมของระบบประสาทผ่านการเข้ารหัสเฟสและการจับคู่ข้ามความถี่กับแกมมา ไม่ว่าจะเป็นในส่วน CA1 ของสัตว์ฟันแทะระหว่างการวิ่งในเขาวงกต หรือในฮิปโปแคมปัสส่วนหลังของมนุษย์ในระหว่างการนำทางเสมือน เฟสที่อิงตามรูปแบบคลื่นจะเก็บข้อมูลเชิงพื้นที่ การจับคู่ธีตา–แกมมาช่วยสร้างกรอบเวลาตามลำดับขั้นสำหรับการจับเวลาการสไปค์ หลักการเหล่านี้ดูเหมือนจะใช้ได้ทั่วไปในหลายสปีชีส์และหลายภูมิภาคย่อยของฮิปโปแคมปัส
ความแตกต่างของความถี่ธีตาในมนุษย์กับสัตว์ฟันแทะที่เห็นได้ชัดนั้น ส่วนหนึ่งอาจสะท้อนถึงความแตกต่างในเงื่อนไขการเคลื่อนไหว มากกว่าความแตกต่างพื้นฐานระหว่างสปีชีส์ การเดินเคลื่อนไหวทางร่างกายในระหว่างการนำทางในโลกจริงส่งผลให้เกิดการแกว่งตัวที่เร็วกว่าการเคลื่อนไหวเสมือนจริง และการศึกษาการนำทางเสมือนจริงในมนุษย์ยุคแรกๆ อาจประเมินความถี่ของธีตาต่ำเกินไปอย่างเป็นระบบ ช่องว่างความถี่จะแคบลงเมื่อมนุษย์เคลื่อนไหวจริง
การแกว่งตัวแบบคู่นี้ยังเสนอทางออกให้กับความคลุมเครือในวรรณกรรมเกี่ยวกับธีตาของมนุษย์ นักวิจัยที่มองหาจังหวะธีตา 4–8 Hz จังหวะเดียวเห็นผลลัพธ์ที่ก้ำกึ่งเพราะสัญญาณประกอบด้วยองค์ประกอบที่แตกต่างกันอย่างน้อยสองอย่างที่มีความเกี่ยวข้องในการทำงานที่แตกต่างกัน งานด้านความจำมีส่วนร่วมกับองค์ประกอบหนึ่ง งานเชิงพื้นที่มีส่วนร่วมกับอีกองค์ประกอบหนึ่ง
กรอบการทำงานแบบแกว่งตัวเดี่ยวนั้นเหมาะสมสำหรับการสืบสวนในยุคแรกๆ แต่ไม่เพียงพอสำหรับการจับความซับซ้อนทั้งหมดของไดนามิกฮิปโปแคมปัสในมนุษย์
ทำไมคลื่นธีตาจึงเป็นระบบจับเวลาของสมองสำหรับความจำและการนำทาง
คลื่นธีตาคือระบบจับเวลาที่กำหนดเวลาที่นิวรอนจะยิงสัญญาณ เพื่อให้สามารถสร้างความทรงจำและเข้ารหัสข้อมูลเชิงพื้นที่ได้
หลักฐานที่สอดคล้องกันจากการบันทึกข้อมูลของสัตว์ฟันแทะและมนุษย์เผยให้เห็นจังหวะฮิปโปแคมปัสสองแบบที่แตกต่างกัน ได้แก่ ธีตาแบบช้าที่ผูกติดกับการเข้ารหัสความจำ และธีตาแบบเร็วที่ผูกติดกับการนำทาง จังหวะทั้งสองช่วยประสานกิจกรรมแกมมาที่เร็วกว่า สร้างหน้าต่างแบบเป็นชั้นซึ่งเซลล์สมองสามารถประมวลผลข้อมูลได้ เนื่องจากพฤติกรรมการเคลื่อนไหวทางร่างกายจะเพิ่มความถี่ของธีตา ระบบจับเวลานี้จึงมีความเกี่ยวข้องมากขึ้นในการนำทางในโลกจริงมากกว่าภารกิจเสมือนจริง
การแบ่งแยกระหว่างธีตาแบบช้าและแบบเร็วยังช่วยชี้แจงว่าทำไมการศึกษาในมนุษย์ก่อนหน้านี้จึงดูเหมือนไม่สอดคล้องกัน นั่นคือ นักวิจัยกำลังมองหาคลื่นสมองเพียงหนึ่งเดียวในขณะที่ฮิปโปแคมปัสสร้างจังหวะขึ้นมาหลายแบบจริงๆ แม้ว่าหลักฐานเครือข่ายของมนุษย์จะยังคงเป็นเชิงสหสัมพันธ์ แต่รูปแบบโดยรวมของวิธีการบันทึกที่หลากหลายก็สนับสนุนบทบาทของธีตาในฐานะผู้จัดระเบียบพื้นฐานของความจำและการนำทาง
การตระหนักว่าธีตาเป็นสถาปัตยกรรมทางเวลามากกว่าที่จะเป็นสภาวะเดียวช่วยอธิบายว่าสมองแบ่งส่วนประสบการณ์ ผูกมัดภูมิภาคที่ห่างไกล และดึงความทรงจำที่สอดคล้องกันกลับมาได้อย่างไร จังหวะเหล่านี้สร้างขีดความสามารถขั้นพื้นฐานของสมองในการจดจำว่าเราอยู่ที่ไหนและเราได้สัมผัสกับอะไรมาบ้าง
เอกสารอ้างอิง
Belluscio, M. A., Mizuseki, K., Schmidt, R., Kempter, R., & Buzsáki, G. (2012). Cross-frequency phase–phase coupling between theta and gamma oscillations in the hippocampus. The Journal of neuroscience, 32(2), 423-435. https://doi.org/10.1523/JNEUROSCI.4122-11.2012
Lega, B. C., Jacobs, J., & Kahana, M. (2012). Human hippocampal theta oscillations and the formation of episodic memories. Hippocampus, 22(4), 748-761. https://doi.org/10.1002/hipo.20937
Herweg, N. A., Apitz, T., Leicht, G., Mulert, C., Fuentemilla, L., & Bunzeck, N. (2016). Theta-alpha oscillations bind the hippocampus, prefrontal cortex, and striatum during recollection: evidence from simultaneous EEG–fMRI. The Journal of Neuroscience, 36(12), 3579-3587. https://doi.org/10.1523/JNEUROSCI.3629-15.2016
Bohbot, V. D., Copara, M. S., Gotman, J., & Ekstrom, A. D. (2017). Low-frequency theta oscillations in the human hippocampus during real-world and virtual navigation. Nature communications, 8(1), 14415. https://doi.org/10.1038/ncomms14415
Lega, B. C., Jacobs, J., & Kahana, M. (2012). Human hippocampal theta oscillations and the formation of episodic memories. Hippocampus, 22(4), 748-761. https://doi.org/10.1002/hipo.20937
คำถามที่พบบ่อย
คลื่นธีตาคืออะไร?
คลื่นธีตา คือการแกว่งตัวของกระแสไฟฟ้าที่เป็นจังหวะในช่วงแถบความถี่ 4–8 Hz ซึ่งปรากฏในการบันทึก EEG และมีความโดดเด่นเป็นพิเศษในฮิปโปแคมปัส พวกมันช่วยแบ่งกิจกรรมของสมองออกเป็นช่องหน้าต่างเวลาเฉพาะเจาะจงที่ช่วยสนับสนุนความจำและการนำทาง
การเข้ารหัสเฟสคืออะไร?
การเข้ารหัสเฟส อธิบายว่าระยะเวลาในการยิงสัญญาณของนิวรอนเมื่อเทียบกับวงจรคลื่นธีตานั้นส่งผ่านข้อมูลที่มีความหมายเกี่ยวกับพฤติกรรมหรือประสบการณ์ได้อย่างไร นิวรอนจะคายประจุที่ตำแหน่งที่แน่นอนและสม่ำเสมอภายในวงจร และรูปทรงของคลื่นเองก็ช่วยมอบรายละเอียดการคำนวณสำหรับตำแหน่งเชิงพื้นที่
การจับคู่ข้ามความถี่คืออะไร?
การจับคู่ข้ามความถี่ อธิบายว่าเฟสของการแกว่งตัวของธีตาควบคุมแอมพลิจูดของการแกว่งตัวของแกมมาที่เร็วกว่าอย่างไร ธีตาให้โครงร่างเวลาที่ช้ากว่า ในขณะที่แกมมาให้ช่องหน้าต่างที่ละเอียดกว่าซ้อนอยู่ภายในนั้นเพื่อควบคุมการจับเวลาการสไปค์ข้ามโครงสร้างสมอง
การแกว่งตัวของธีตาสองประเภทในฮิปโปแคมปัสของมนุษย์คืออะไร?
ฮิปโปแคมปัสของมนุษย์สร้างธีตาแบบช้าที่ประมาณ 3 Hz และธีตาแบบเร็วที่ประมาณ 8 Hz โดยธีตาแบบช้าจะเชื่อมโยงเป็นพิเศษกับการเข้ารหัสความจำ ในขณะที่ธีตาแบบเร็วจะเชื่อมโยงกับการนำทางเชิงพื้นที่และปรับระดับความถี่ตามความเร็วการเคลื่อนที่
ธีตามีส่วนช่วยในการเข้ารหัสความทรงจำอย่างไร?
ในระหว่างการเข้ารหัสความจำที่ประสบความสำเร็จ การแกว่งตัวของธีตาแบบช้าที่ประมาณ 3 Hz จะแสดงกำลังไฟฟ้าที่สูงขึ้นและเชื่อมโยงการทำงานกับการแกว่งตัวของแกมมา กลไกการจับคู่ข้ามความถี่นี้สนับสนุนการสร้างความทรงจำเชิงเหตุการณ์ใหม่ในระหว่างการทำกิจกรรมของกระบวนการรู้คิด
ธีตาประสานงานการดึงข้อมูลความจำทั่วสมองอย่างไร?
ในระหว่างการระลึกได้ การแกว่งตัวในช่วงธีตา-อัลฟาสัมพันธ์กับการเชื่อมต่อที่เพิ่มขึ้นระหว่างฮิปโปแคมปัส เปลือกสมองส่วนหน้า และสไตรเอตัม การประสานเวลาของเฟสช่วยประสานการสไปค์ข้ามภูมิภาคที่อยู่ห่างไกลเหล่านี้ เพื่อให้ข้อมูลที่กระจายตัวรวมกันเป็นตัวแทนความทรงจำที่สอดคล้องกัน
ทำไมการศึกษาธีตาในมนุษย์จึงดูแตกต่างจากการศึกษาในสัตว์ฟันแทะ?
การศึกษาการนำทางเสมือนจริงของมนุษย์ก่อนหน้านี้อาจประเมินความถี่ของธีตาต่ำเกินไป เนื่องจากผู้เข้าร่วมไม่ได้เคลื่อนไหวร่างกายจริง การเดินในโลกจริงจะเปลี่ยนความถี่ธีตาให้สูงขึ้น ซึ่งจะช่วยลดช่องว่างระหว่างการแกว่งตัวของฮิปโปแคมปัสของมนุษย์และสัตว์ฟันแทะได้บางส่วน
ฮิปโปแคมปัสส่วนหน้าและส่วนหลังประมวลผลธีตาแตกต่างกันหรือไม่?
ฮิปโปแคมปัสส่วนหลังแสดงการแกว่งตัวที่เด่นชัดประมาณ 8 Hz ซึ่งสัมพันธ์กับความเร็วในการเคลื่อนที่ ขณะที่ฮิปโปแคมปัสส่วนหน้าแสดงการแกว่งตัวที่ช้ากว่าประมาณ 3 Hz ซึ่งไม่แปรผันตามความเร็วในการเคลื่อนไหว การแยกแยะนี้บ่งชี้ว่าธีตาแบบเร็วเป็นเรื่องของเชิงพื้นที่ ในขณะที่ธีตาแบบช้าสะท้อนถึงกระบวนการรู้คิดที่ไม่ใช่เชิงพื้นที่
ธีตาเป็นคลื่นสมองเดี่ยวๆ หรือเป็นการแกว่งตัวที่แตกต่างกันหลายแบบ?
ฮิปโปแคมปัสสร้างการแกว่งตัวที่หลากหลายครอบคลุมประมาณ 2–14 Hz แทนที่จะเป็นสัญญาณรวมเพียงหนึ่งเดียว การแกว่งตัวเหล่านี้แสดงการกระจายทางกายวิภาค ความสัมพันธ์ทางพฤติกรรม และความสัมพันธ์กับการทำงานของกระบวนการรู้คิดที่แตกต่างกัน ซึ่งบ่งชี้ว่าธีตาไม่ได้เป็นสภาวะคลื่นสมองระดับโลกเพียงอย่างเดียว
Emotiv เป็นผู้นำด้านนิวโรเทคโนโลยีที่ช่วยขับเคลื่อนการวิจัยประสาทวิทยาศาสตร์ผ่านเครื่องมือ EEG และข้อมูลสมองที่เข้าถึงได้
ข้อจำกัดความรับผิดชอบทางการแพทย์: ข้อมูลที่ให้ไว้บนเว็บไซต์นี้มีวัตถุประสงค์เพื่อการศึกษาและการให้ข้อมูลเท่านั้น และไม่ได้มีวัตถุประสงค์เพื่อเป็นคำแนะนำทางการแพทย์หรือสุขภาพ เนื้อหานี้อาจมีข้อผิดพลาดและไม่ควรนำมาใช้ในการตัดสินใจเลือกแนวทางชีวิต สุขภาพ หรือการรักษาทางการแพทย์ที่เปลี่ยนชีวิต โปรดขอคำแนะนำจากแพทย์หรือผู้ให้บริการด้านสุขภาพที่มีคุณสมบัติเหมาะสมเสมอ หากมีคำถามใดๆ ที่คุณอาจมีเกี่ยวกับอาการเจ็บป่วยหรือการรักษา
คริสเตียน บูร์โกส