שינה מתוארת לעיתים קרובות כנסיגה שקטה מהחיים החושיים, אך ברמת גלי המוח מדובר במצב פעיל ביותר ומסודר ברצף מדויק.
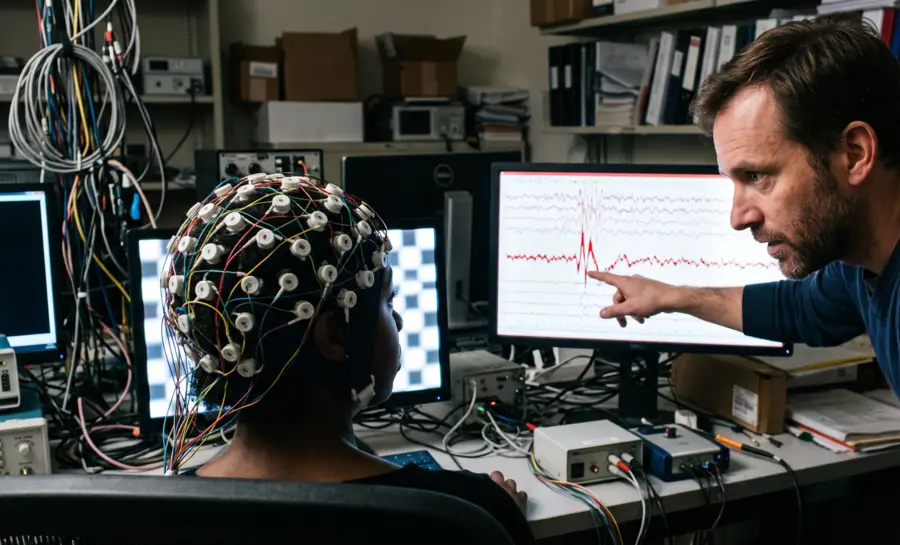
בדיקת אלקטרואנצפלוגרפיה (EEG) רושמת פעילות זו מהקרקפת, ומדעי המוח המודרניים משתמשים ברישומים אלה כדי להראות שהמוח הישן עובר דרך התקדמות מסודרת של מצבים תנודתיים, משינה קלה שאינה שנת חלום (NREM) לשינה עמוקה של גלים איטיים ולאחר מכן לשנת חלום (REM). לכל מצב יש חתימה חשמלית משלו, וכל חתימה משקפת דפוסים שונים של פעילות תאית ורשתית.
דפוסי גלי מוח במהלך שלבי השינה
השינה מאורגנת במחזורים חוזרים ונשנים ולא במצב אחיד יחיד. שינת נון-רם (Non-REM) מתקדמת משינה קלה לשינה עמוקה של גלים איטיים, ולאחריה מגיעות תקופות של שינת רם (REM) שהופכות לארוכות יותר בשלב מאוחר יותר של הלילה. גלי מוח מסייעים בהבחנה בין שלבים אלה, אך קביעת שלבי השינה לוקחת בחשבון גם תנועות עיניים, מתח שרירים, נשימה ואותות אחרים.
שלב שינה | מאפייני EEG טיפוסיים | תפקיד כללי במבנה השינה |
|---|---|---|
N1 | אלפא מופחת ותטא מוגבר | מעבר לשינה |
N2 | רקע תטא, כישורי שינה ומכלולי K | שינת נון-רם יציבה והכנה לשינה עמוקה יותר |
N3 | פעילות דלתא איטית ובעלת אמפליטודה גבוהה | שינה עמוקה של גלים איטיים |
REM | פעילות באמפליטודה נמוכה ובתדר מעורב | הקשרים של חלימה, זיכרון ועיבוד רגשי |
שלב N1: גלי מוח אלפא לתחילת השינה
שלב N1 הוא המעבר הקצר מערנות לשינה. פעילות האלפא, האופיינית לערנות רגועה, פוחתת בהדרגה ככל שפעילות תטא איטית יותר הופכת לדומיננטית יותר. פעילות השרירים מתחילה להירגע, המודעות לסביבה דועכת, ואנשים עשויים לחוות מחשבות נסחפות או תחושות קצרות של נפילה.
N1 אינו נחשב בדרך כלל לשינה עמוקה ומרעננת. זהו מצב סף, והתעוררויות קצרות יכולות להחזיר את המוח לערנות. נוכחות של פעילות אלפא קרוב לתחילת השינה אינה מעידה, אם כן, על כך שהמוח נכנס לשלב שינה יציב או עמוק.
שלב N2: גלי המוח הטובים ביותר לשינה עמוקה
שלב N2 הוא עדיין שינת נון-רם קלה עד בינונית, אם כי הוא תופס בדרך כלל חלק ניכר מהלילה. רישומי EEG מראים רקע של פעילות תטא שנקטעת על ידי כישורי שינה ומכלולי K, שני מאפיינים ייחודיים המשמשים לקביעה רשמית של שלבי השינה. אירועים אלה משקפים שינויים מאורגנים בפעילות המוח ולא קצב רציף יחיד.
שלב N3: שינה עמוקה (שינת גלים איטיים)
שלב N3 הוא שלב הנון-רם העמוק ביותר והוא מאופיין בגלים איטיים בולטים בעלי אמפליטודה גבוהה, המתוארים בדרך כלל כפעילות דלתא. קשה יותר להתעורר מ-N3 מאשר משינה קלה יותר, ושלב זה מרוכז מוקדם יותר בלילה הביולוגי עבור אנשים רבים. כמות וביטוי שינת הגלים האיטיים יכולים להשתנות בהתאם לגיל, שינה קודמת, עיתוי צירקדיאני ובריאות.
שינת REM: שלב החלימה
שינת רם (REM) קשורה לחלימה חיה עבור אנשים רבים, תנועות עיניים מהירות והפחתה ניכרת במתח שרירי השלד. דפוס ה-EEG שלה הוא בדרך כלל בעל אמפליטודה נמוכה ובתדר מעורב, מה שהופך אותו לדמה יותר לערנות מאשר לשינת N3. פעילות תטא ומקצבים אחרים עשויים להופיע, אך שינת רם מזוהה באמצעות השילוב של אותות המוח, העיניים והשרירים.
כיצד המוח עובר מערנות לשינה
המעבר מערנות לשינה הוא שינוי מתואם בדרך שבה קליפת המוח (הקורטקס) והתלמוס מתקשרים, שינוי במצב הפעולה המוגדר כברירת מחדל של המוח. הרשת שמחברת בין אזורים אלה, הנקראת המערכת התלמוקורטיקלית, מייצרת חלק גדול מהפעילות החשמלית הקצבית הנרשמת בקרקפת.
במהלך ערנות, נוירונים במערכת זו פועלים באופן לא סדיר ומגיבים באופן סלקטיבי למידע חושי נכנס. כאשר השינה מתחילה, אותה רשת עוברת לדפוס מסונכרן ביותר הנשלט על ידי תנודות איטיות של פוטנציאל הממברנה, המתח החשמלי על פני הממברנה של כל נוירון.
בקצב זה, נוירון קורטיקלי עובר לסירוגין בין מצב 'למטה' (down-state) היפרפולריזטורי, שבו הוא כמעט שקט, לבין מצב 'למעלה' (up-state) דה-פולריזטורי, שבו הוא פועל בעוצמה רבה. המחזור חוזר על עצמו בתדר הנמוך מ-1 הרץ.
מודל המעבר העצבי מערנות לשינה
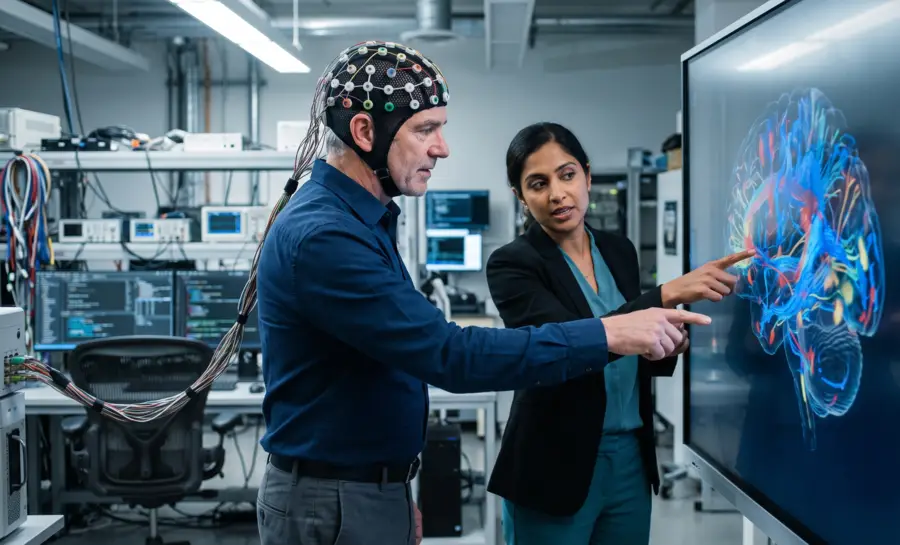
הבנת המעבר הזה דורשת מעבר מנוירונים בודדים לרשתות גדולות. מודל ממוחשב בקנה מידה גדול, שנבנה מאלפי נוירונים עם מספר זרמים פנימיים ומיליוני קשרים הדדיים על פני קליפת המוח הראייתית וגרעיני התלמוס, שיחזר את דפוסי הפעילות של ערנות ושינה כאחד.
במצב ערנות, המודל מציג ירי ספונטני לא סדיר ותגובות סלקטיביות לקלט ראייתי. במצב שינה, שינויים נוירומודולטוריים דוחפים את הרשת לתנודות איטיות הדומות מאוד לאלו שנרשמו ברקמה חיה.
חקירה שיטתית של מודל זה הראתה כי עלייה במוליכות דליפת אשלגן מספיקה כדי לעורר את המעבר מערנות לשינה. ברגע שהרשת נכנסת למצב שינה, הפעלת זרמי נתרן מתמידים מתחילה את מצב ה'למעלה'.
שילוב של זרמים פנימיים וסינפטיים שומר לאחר מכן על מצב ה'למעלה', בעוד שזרמי אשלגן המופעלים על ידי דה-פולריזציה ודיכאון סינפטי מביאים אותו לסיומו. קשרים קורטיקו-קורטיקליים מסנכרנים אז את התנודה האיטית על פני קליפת המוח. קצב תאי זה הוא מנוע בסיסי של פעילות המוח הישן, מנוע המארגן גלי מוח אחרים במהלך הלילה.
גלים איטיים נודדים: מתווה מרחבי-זמני לשינה
התנודה האיטית עשויה להתחיל כאירוע תאי, אך היא אינה נשארת מקומית. באמצעות EEG בצפיפות גבוהה, החוקרים Massimini וחב' הראו שכל מחזור של התנודה האיטית הוא גל נודד. במקום להפעיל את כל קליפת המוח בבת אחת, הגל מקורו באתר מוגדר והוא נע על פני הקרקפת במהירות מוערכת של 1.2 עד 7.0 מטרים לשנייה.
רוב הגלים מתעוררים באזורים הקדמיים, לעיתים קרובות באזורים פרה-פרונטליים ואורביטו-פרונטליים ממש מאחורי המצח, ומתפשטים לכיוון גב המוח בכיוון קדמי-אחורי. ככל שהשינה מעמיקה, גלים אלה מתרחשים בתדירות גבוהה יותר, ומגיעים בסופו של דבר לכמעט פעם בשנייה. קצב מואץ זה מתחיל להתיישב עם גלי הדלתא בעלי האמפליטודה הגבוהה המאפיינים את השלבים העמוקים ביותר של שינת NREM.
מה שהופך את הדפוס המרחבי הזה למשמעותי הוא היכולת לשחזר אותו. אתרי המקור ומסלולי ההתפשטות של תנודות איטיות ניתנים לשחזור בלילות שונים ואפילו אצל אנשים שונים. עקביות זו מרמזת כי הגל הנודד מתנהג כמו מפה של קישוריות ועוררות קורטיקלית אינדיבידואלית, המשקפת את החיווט הבסיסי של כל מוח ישן.
יתרה מכך, אותו גל מתואם עשוי למלא גם תפקיד בלמידה. פלסטיות סינפטית תלויית תזמון דחפים (STDP) היא מנגנון עצבי שבו התזמון המדויק בין אירועי ירי קובע אם סינפסה מתחזקת או נחלשת.
כאשר גל של פעילות מתואמת נע דרך נוירונים מחוברים, הוא יכול ליצור את יחסי התזמון המניעים צורה זו של פלסטיות במהלך השינה. לכן, מוצע כי התנודה האיטית הנודדת מספקת מסגרת מרחבית וזמנית לארגון מחדש של קשרים קורטיקליים במהלך הלילה.
כיצד כישורי שינה ואדוות מגבשים זיכרון
נראה כי אחד התפקידים העיקריים של גלי תנודות איטיים הוא ארגון מקצבי שינה מהירים יותר, במיוחד כישורי שינה (sleep spindles) ואדוות גלים חדים (sharp-wave ripples).
כישורי שינה הם התפרצויות קצרות של פעילות תנודתית בפס תדרים מובחן, ואדוות גלים חדים הן אירועים מהירים עוד יותר, תנודות קצרות של כ-200 הרץ המיוצרות על ידי ירי מסונכרן היטב בהיפוקמפוס. התנודה האיטית מספקת מבנה זמני חוזר, ובתוך מבנה זה האירועים המהירים יותר מוצאים את התזמון שלהם.
כאשר מקצבים מהירים אלה מקוננים בתוך שלבים מסוימים של התנודה האיטית יותר, המוח מבצע צורה של צימוד חוצה-תדרים (cross-frequency coupling), קשר תזמון שבו מקצבים איטיים יותר מכתיבים סדר למקצבים מהירים יותר. צימוד זה נחשב למרכזי לאופן שבו שינה תומכת בזיכרון.
ראיות ישירות מגיעות מרישומים של נוירונים בהיפוקמפוס במהלך שינת גלים איטיים בחולדות. ההיפוקמפוס ממלא תפקיד מפתח בהמרת חוויה לעקבות עצביים יציבים, ובמהלך שינת גלים איטיים הוא מפעיל באופן ספונטני מחדש דפוסי פעילות מהתנהגות ערנות קודמת.
דרך אחת למדוד הפעלה מחדש זו היא לעקוב אחר מתאמי קצב ירי זוגיים, הנטייה של זוגות תאי CA1 פירמידליים לפעול יחד. התפלגות מתאמים אלה במהלך חוויה מוכרת מסבירה חלק נכבד מהשונות בדפוסי הירי במהלך שינת גלים איטיים וערנות שקטה שלאחר מכן.
השחזור החזק ביותר דווח כמתרחש במהלך תנודות של אדוות גלים חדים. תזמון זה מצביע על כך שאדוות עשויות להיות רגעים שבהם רשת ההיפוקמפוס מתכנסת למצבי מושך (attractor states), דפוסי פעילות יציבים התואמים לחוויות קודמות.
מדוע מקצבי המוח של הלילה חשובים לזיכרון ולעוררות
השינה היא תהליך נוירולוגי פעיל ומובנה ביותר המונע על ידי רצף מדויק של מקצבים חשמליים. המעבר החלק מירי תלמוקורטיקלי של ערנות לתנודות איטיות ומסונכרנות מתחת ל-1 הרץ יוזם שינוי גלובלי המתאם את קליפת המוח כולה.
ככל שגלים איטיים נודדים אלה מתפשטים לאורך נתיבים עקביים, הם ממפים קישוריות עצבית אינדיבידואלית ומכינים במה מרחבית-זמנית לפלסטיות סינפטית. בתוך מסגרת זו של גלים איטיים, הקינון של כישורי שינה מהירים יותר ואדוות גלים חדים בהיפוקמפוס — המכונה צימוד חוצה-תדרים — מאפשר למוח לשחזר ולגבש זיכרונות של חוויות ערנות.
בסופו של דבר, הבנת התנודות המורכבות והמסונכרנות הללו חושפת כיצד השינה פועלת כמנוע קריטי לארגון מחדש של מערכת העצבים, גיבוש זיכרון ותחזוקה קוגניטיבית כללית.
מקורות
Hill, S., & Tononi, G. (2005). Modeling sleep and wakefulness in the thalamocortical system. Journal of neurophysiology, 93(3), 1671-1698. https://doi.org/10.1152/jn.00915.2004
Massimini, M., Huber, R., Ferrarelli, F., Hill, S., & Tononi, G. (2004). The sleep slow oscillation as a traveling wave. The Journal of Neuroscience, 24(31), 6862-6870. https://doi.org/10.1523/JNEUROSCI.1318-04.2004
Kudrimoti, H. S., Barnes, C. A., & McNaughton, B. L. (1999). Reactivation of hippocampal cell assemblies: effects of behavioral state, experience, and EEG dynamics. The Journal of Neuroscience, 19(10), 4090-4101. https://doi.org/10.1523/JNEUROSCI.19-10-04090.1999
Prerau, M. J., Brown, R. E., Bianchi, M. T., Ellenbogen, J. M., & Purdon, P. L. (2017). Sleep neurophysiological dynamics through the lens of multitaper spectral analysis. Physiology, 32(1), 60-92. https://doi.org/10.1152/physiol.00062.2015
שאלות נפוצות
מה קורה במוח כשאנחנו נרדמים?
המעבר מערנות לשינה הוא שינוי מתואם באופן שבו קליפת המוח והתלמוס — המערכת התלמוקורטיקלית — מתקשרים. נוירונים עוברים מירי לא סדיר בתגובה לקלט חושי לירי בדפוס מסונכרן ביותר הנשלט על ידי תנודות איטיות.
מהי התנודה האיטית?
התנודה האיטית היא קצב שבו נוירון קורטיקלי עובר לסירוגין בין מצב 'למטה' היפרפולריזטורי כמעט שקט לבין מצב 'למעלה' דה-פולריזטורי פעיל, החוזר על עצמו בתדר מתחת ל-1 הרץ. היא פועלת כמנוע בסיסי המארגן מקצבי מוח אחרים במהלך הלילה.
מהם גלים איטיים נודדים?
כל מחזור של התנודה האיטית הוא גל נודד שמקורו באתר ספציפי, בדרך כלל באזורים הקדמיים של המוח, ומתפשט לכיוון הגב. אתרי המקור ומסלולי ההתפשטות ניתנים לשחזור בלילות שונים ובקרב אנשים שונים, מה שמצביע על כך שהם משקפים את החיווט והקישוריות הבסיסיים של המוח.
כיצד השינה מסייעת בגיבוש הזיכרון?
במהלך שינת גלים איטיים, ההיפוקמפוס מפעיל מחדש דפוסי פעילות מחוויות ערנות קודמות, כאשר ההפעלה המחדש החזקה ביותר מתרחשת במהלך אדוות גלים חדים. התנודה האיטית מארגנת מקצבים מהירים יותר כמו כישורים ואדוות, וצימוד זה מרכזי לגיבוש הזיכרון.
Emotiv היא מובילה בתחום הנוירוטכנולוגיה המסייעת לקדם מחקר במדעי המוח באמצעות כלי EEG נגישים וכלי נתוני מוח.
הבהרה רפואית: המידע המסופק באתר זה נועד למטרות חינוכיות ואינפורמטיביות בלבד ואינו מיועד לשמש כייעוץ רפואי או בריאותי. תוכן זה עלול להכיל שגיאות ואין להסתמך עליו לצורך קבלת החלטות משנות חיים בנושאי בריאות, רפואה או סגנון חיים. פנה תמיד לקבלת ייעוץ מהרופא שלך או מכל גורם רפואי מוסמך אחר בכל שאלה שעשויה להיות לך בנוגע למצב רפואי או לטיפול.
כריסטיאן בורגוס