Onder de verschillende hersenritmes heeft er één al decennialang de aandacht van neurowetenschappers getrokken, omdat het zich lijkt te bevinden op het snijvlak van actie, perceptie en sociaal begrip.
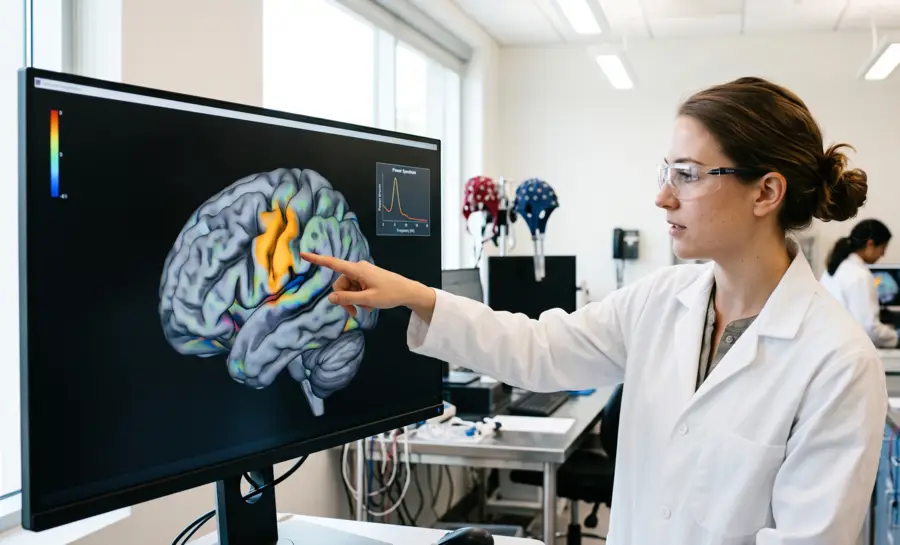
Het mu-ritme, een oscillatie van 8-13 Hz die wordt geregistreerd over de sensorimotorische cortex, neemt af in kracht telkens wanneer we een handeling uitvoeren, iemand anders diezelfde handeling zien uitvoeren of ons zelfs maar voorstellen dat we deze uitvoeren. Deze eigenschap, bekend als desynchronisatie, heeft het mu-ritme tot een centrale speler gemaakt in het onderzoek naar imitatie, empathie en klinische stoornissen variërend van stotteren tot autisme.
Wat is het EEG-muritme?
Het EEG-muritme is een patroonmatige oscillatie die wordt geregistreerd via hoofdhuid-elektroden over de sensomotorische gebieden van de hersenen. Het wordt vaak beschreven als een boogvormig of kamvormig ritme met een alfa-achtige frequentie, meestal rond 8–13 Hz, hoewel de gerapporteerde grenzen per studie variëren. Het ritme kan aanwezig zijn tijdens rustige waakzaamheid en kan veranderen wanneer het sensomotorische systeem actief wordt.
Mu-activiteit is geen afzonderlijke elektrische substantie of een directe weergave van een enkel mentaal proces. Het is een meetbaar patroon in een elektro-encefalogram, gevormd door neurale bronnen, elektrodeplaatsing, referentiekeuze en de toestand van de persoon. Een zichtbaar ritme moet daarom in context worden geïnterpreteerd en niet worden behandeld als een op zichzelf staand teken van een bepaald gedrag of een aandoening.
Muritme-EEG: Waar het vandaan komt
Het muritme ontstaat in de premotorische en motorische gebieden van de cortex en wordt voortdurend gevormd door subcorticale structuren, met name de basale ganglia: een verzameling kernen diep in de hersenen die de initiatie en remming van bewegingen reguleren. De gevoeligheid van het ritme voor zowel motorische als sensorische processen komt voort uit de verdeling in twee functioneel verschillende frequentiebanden.
De langzamere component, mu-alfa, beslaat het klassieke bereik van 8–13 Hz en reageert voornamelijk op remmende signalen van de basale ganglia en op sensorische feedback die aankomt bij de motorische cortex. Zie mu-alfa als een graadmeter voor de mate waarin de motorische output van de hersenen in toom wordt gehouden en hoe binnenkomende sensorische informatie — het gevoel van een oppervlak, de positie van een ledemaat — wordt geïntegreerd.
De snellere component, mu-bèta, bestrijkt 14–25 Hz en weerspiegelt een andere computationele stroom. Het registreert de interne voorwaartse modellen van de hersenen, de voorspellingen die het motorische systeem doet over de sensorische gevolgen van beweging. Wanneer u naar een beker reikt, anticiperen uw hersenen al op de tastzin voordat uw vingers contact maken. Mu-bèta volgt de timing en precisie van deze motorisch-naar-sensorische projecties.
Deze architectuur met dubbele banden betekent dat onderzoekers gelijktijdige veranderingen in mu-alfa en mu-bèta kunnen waarnemen over het tijdsverloop van specifieke gebeurtenissen, wat een rijk inzicht biedt in de neurofysiologische functie. Verstoringen in de ene band maar niet in de andere kunnen onthullen of een klinische aandoening voortkomt uit een gebrekkige remming, verminderde sensorische feedback of een verstoorde interne timing.
Bij mensen die stotteren is de mu-alfa-onderdrukking tijdens een werkgeheugentaak bijvoorbeeld aanzienlijk verminderd in vergelijking met vloeiende sprekers, wat wijst op specifieke tekortkomingen in de basale ganglia en sensomotorische integratie die zich met hoge temporele precisie ontvouwen.
Kenmerk | Mu-alfa | Mu-bèta |
|---|---|---|
Frequentie | 8–13 Hz | 14–25 Hz |
Belangrijkste rol | Remming en sensorische feedback | Interne voorwaartse modelvoorspellingen |
Gevoelig voor | Signalen van basale ganglia | Timing van motorisch-naar-sensorische projecties |
Klinisch voorbeeld | Verminderde onderdrukking bij stotteren | Verstoorde interne timing |
Hoe het muritme te identificeren
Op een ruw EEG-tracé kan het muritme verschijnen als een relatief regelmatige, boogvormige golfvorm over de centrale afleidingen. Het kan bilateraal zijn of sterker aan één kant, en het kan intermitterend zijn in plaats van continu zichtbaar. De vorm kan scherp geprononceerd overkomen zonder epileptiform te zijn, dus morfologie alleen mag de klinische betekenis niet bepalen.
Een praktisch identificatieproces vergelijkt het vermoedelijke ritme met de verdeling over de hoofdhuid, frequentie, toestandsafhankelijkheid en reactie op een relevante taak. Een ritme dat verandert bij contralaterale handbewegingen of een andere sensomotorische manipulatie is meer in overeenstemming met reactieve mu-activiteit dan een gelijkvormig ritme dat onveranderd blijft. Zelfs dan is de bevinding probabilistisch en niet doorslaggevend.
Verschillende waarnemingen zijn bijzonder nuttig bij het beoordelen van een registratie:
De activiteit is maximaal of prominent nabij centrale elektroden in plaats van uitsluitend posterieure elektroden.
De dominante frequentie valt binnen een alfa-achtig sensomotorisch bereik.
De amplitude of het vermogen verandert tijdens beweging, motorische verbeelding of actie-observatie.
Het patroon is reproduceerbaar over meerdere trials en wordt niet verklaard door spier- of elektrode-artefacten.
Deze controles verkleinen het risico dat mu wordt verward met posterieure alfa, ritmische artefacten of een incidentele normale variant. Ze laten ook zien waarom een enkel kort segment van een EEG zelden de volledige interpretatieve vraag beantwoordt.
Muritme versus alfaritme: Belangrijke verschillen
Mu- en alfaritmes kunnen elkaar qua frequentie overlappen, wat de belangrijkste reden is dat ze soms worden verward. Het onderscheid wordt niet gemaakt op basis van frequentie alleen. Alfa wordt typisch geassocieerd met posterieure visuele gebieden en verandert bij het openen of sluiten van de ogen, terwijl mu nauwer geassocieerd is met centrale sensomotorische gebieden en verandert bij sensomotorische betrokkenheid.
Hun golfvormen kunnen er ook vergelijkbaar uitzien. Beide kunnen ritmisch zijn, en beide kunnen qua amplitude variëren over toestanden en personen. Een centraal ritme dat op alfa lijkt, moet worden getest op topografie en reactiviteit in plaats van uitsluitend op basis van uiterlijk te worden geclassificeerd.
De volgende tegenstellingen zijn nuttig, maar niet absoluut:
Vraag | Muritme | Alfaritme |
|---|---|---|
Waar is het gewoonlijk het sterkst? | Centrale sensomotorische hoofdhuidgebieden | Posterieure of occipitale hoofdhuidgebieden |
Wat verandert het gewoonlijk? | Beweging, motorische verbeelding of actie-observatie | Visuele toestand, vooral ogen open versus gesloten |
Wat vertelt de frequentie ons? | Het kan een alfa-achtig bereik innemen | Frequentie alleen is niet voldoende voor identificatie |
Wat is het grootste interpretatieve risico? | Het verwarren met posterieure alfa of een artefact | Het verwarren van posterieure activiteit met centrale mu |
Deze onderscheidingen sturen de analyse, maar vervangen het onderzoek van de volledige montage niet. Referentiekeuze, volumegeleiding en overlappende bronnen kunnen de verdelingen over de hoofdhuid minder eenduidig maken dan voorbeelden uit de leerboeken suggereren.
Analysemethoden voor het EEG-muritme
EEG-mustudies maken gebruik van zowel visuele als kwantitatieve methoden. Visuele beoordeling kijkt naar golfvorm, verdeling, toestand en reactiviteit, terwijl kwantitatieve analyse het vermogen of de amplitude in een vooraf geselecteerd frequentiebereik schat. Betrouwbaar werk rapporteert gewoonlijk de referentie, filters, artefactuitsluitingen, epochtiming, baseline en het statistische model, zodat het resultaat kan worden geëvalueerd en gereproduceerd.
Tijd-frequentieanalyse is vaak nuttig omdat mu-reacties van voorbijgaande aard en taakgebonden kunnen zijn. Frequentieanalyse zet spanningsveranderingen om in een representatie van ritmische componenten, terwijl tijdopgeloste methoden laten zien wanneer een verandering begint en hoe lang deze duurt. Onderzoekers moeten nog steeds een echt neuraal effect onderscheiden van lekkage over frequenties heen, filtereffecten en niet-neurale verontreiniging.
Event-Related Desynchronization uitgelegd
Event-related desynchronization, of ERD, is een taakgerelateerde afname in oscillatoir vermogen ten opzichte van een referentieperiode. Voor mustudies wordt ERD gewoonlijk berekend rond beweging of motorische verbeelding en uitgedrukt als een percentage of decibelverandering ten opzichte van de baseline. De methode legt een relatieve respons vast, wat vaak de voorkeur heeft boven het vergelijken van ruwe amplitudes tussen mensen met een verschillende schedelgeleiding, elektrodecontact of baselinevermogen.
Een typische ERD-analyse verdeelt de registratie in trials, verwijdert of markeert verontreinigde segmenten, schat het spectrale vermogen en vergelijkt een taakinterval met een prestimulus- of rustinterval. Het exacte resultaat hangt af van vensterlengte, frequentieresolutie, baselineselectie en correctie voor meervoudige vergelijkingen. Korte vensters behouden de timing, maar geven minder stabiele frequentieschattingen; langere vensters verbeteren de frequentieprecisie, maar kunnen snelle veranderingen vervagen.
De interpretatie moet daarom het volledige analyseontwerp omvatten. Een statistisch significante afname is een bewijs van een taakgerelateerde signaalverandering onder die omstandigheden, geen bewijs dat een specifiek psychologisch mechanisme deze heeft veroorzaakt. Replicatie over taken, sessies en steekproeven heen versterkt de gevolgtrekking.
De spiegelneuronen-hypothese en haar kritiek
Het muritme werd prominent in de sociale neurowetenschap vanwege een elegante hypothese: als dezelfde populatie neuronen vuurt wanneer we handelen en wanneer we een handeling observeren, en als het muritme die neurale activiteit weerspiegelt, dan zou mu-onderdrukking tijdens actie-observatie kunnen dienen als een niet-invasieve index van de functie van het spiegelneuronensysteem. Deze logica dreef honderden studies aan die mu-desynchronisatie koppelden aan imitatie, empathie, taalontwikkeling en theory of mind.
De hypothese rust op een stevige empirische basis. Het muritme verzwakt inderdaad zowel tijdens de uitvoering als tijdens de observatie van een handeling, een eigenschap die het onderscheidt van het posterieure alfaritme, dat voornamelijk reageert op visuele aandacht. Deze functionele gelijkenis met spiegelneuronen, voor het eerst ontdekt in de premotorische en pariëtale cortices van makaakapen, maakte het muritme een aantrekkelijk hulpmiddel voor translationeel menselijk onderzoek.
De specificiteit van dit verband ligt echter onder een vergrootglas. Een kritische test gebruikte crossmodale patroonclassificatie om te bepalen of muritme-activiteit tijdens actie-observatie daadwerkelijk motorische informatie bevat of dat het in plaats daarvan somatosensorische kenmerken weerspiegelt.
Deelnemers observeerden handelingen die varieerden wat betreft het type greep (volledige handgreep of precisiegreep), de aan- of afwezigheid van tactiele stimulatie, en of de handeling het gebruik van een voorwerp inhield (transitief) of niet (intransitief). Wanneer classifiers werden getraind om deze handelingskenmerken te onderscheiden, trad er een boventoevallige classificatie op voor tactiele stimulatie en transitiviteit van de handeling, maar veelzeggend genoeg niet voor het motorische detail van het type greep.
Het muritme leek te coderen of een voorwerp werd aangeraakt en of er een werktuig bij betrokken was, in plaats van het specifieke motorische programma dat vereist is om de greep uit te voeren.
Deze bevinding herdefinieert de functionele rol van het muritme. Wat tijdens actie-observatie desynchroniseert over de sensomotorische cortex, is mogelijk een somatosensorische representatie — de simulatie door de hersenen van hoe de handeling zou voelen — in plaats van een directe motorische simulatie van hoe deze moet worden uitgevoerd.
Dit onderscheid is belangrijk omdat het beperkingen stelt aan het soort conclusies dat onderzoekers kunnen trekken wanneer ze mu-onderdrukking als afhankelijke maat gebruiken. Als het signaal voornamelijk tactiele en transitiviteitsinformatie overbrengt, wordt het interpreteren van mu-onderdrukking tijdens een sociale cognitietest als bewijs van motorische spiegeling problematisch zonder aanvullend convergerend bewijs.
Motorische ervaring stemt de sensomotorische respons af
Ondanks deze zorgen over specificiteit komt één bevinding consequent naar voren: het muritme is buitengewoon gevoelig voor de motorische voorgeschiedenis van een individu. De sensomotorische circuits van de hersenen reageren niet uniform op alle geobserveerde acties. Ze resoneren sterker met acties die de waarnemer persoonlijk heeft uitgevoerd.
Een directe toetsing van dit principe trainde twee groepen volwassenen in een relatief nieuwe actie: het gebruik van een klauwachtig gereedschap om speelgoed op te pakken. Eén groep kreeg actieve motorische training en manipuleerde het gereedschap fysiek zelf totdat ze de handeling vloeiend konden uitvoeren. De tweede groep kreeg een gelijkwaardige visuele blootstelling door herhaaldelijk video's van dezelfde handeling te bekijken en te coderen, maar voerde deze nooit uit. Een derde groep van complete beginners had helemaal geen eerdere ervaring met het gereedschap.
Actieve motorische training: manipuleerde het gereedschap fysiek tot een vloeiende uitvoering.
Visuele blootstelling: bekeek en codeerde video's van de handeling, maar voerde deze nooit uit.
Complete beginners: helemaal geen eerdere ervaring met het gereedschap.
Toen later het EEG werd geregistreerd terwijl alle drie de groepen keken naar de handeling met het gereedschap, vertoonden de actieve uitvoerders de grootste desynchronisatie van het muritme, met name boven de rechterhersenhelft.
De toeschouwers vertoonden, ondanks hun uitgebreide visuele vertrouwdheid, een zwakkere respons. De beginners vertoonden de zwakste respons van allemaal.
Deze gradatie toont aan dat actieve motorische ervaring, meer dan passieve observatie, de sensomotorische circuits vormt die het muritme genereren. De bevinding heeft aanzienlijke implicaties voor het begrijpen van imitatie en vroege sociale leervaardigheden. Het suggereert dat wanneer baby's of volwassenen nieuwe motorische vaardigheden verwerven, hun hersenen selectief worden afgestemd om diezelfde handelingen te detecteren en te verwerken wanneer ze door anderen worden uitgevoerd — een neuraal mechanisme dat de geleidelijke opbouw van een motorisch vocabulaire kan ondersteunen dat aan imitatie ten grondslag ligt.
Opvallend is dat deze studie relatief korte trainingsperioden betrof, in de orde van grootte van een enkele experimentele sessie, in plaats van de jarenlange expertise die werd onderzocht in klassiek spiegelneuronenonderzoek bij dansers of atleten. De gevoeligheid van het muritme voor korte periodes van motorisch leren maakt het een praktisch hulpmiddel voor het bestuderen van hoe ervaringsafhankelijke plasticiteit zich ontvouwt in het sensomotorische systeem.
Muritme in brain-computer interface-onderzoek
De reactiviteit van het muritme op beweging en motorische verbeelding maakt het een kandidaat-signaal voor brain-computer interfaces (BCI's) die geen fysieke beweging vereisen. Verschillende onderzoeksgroepen hebben onderzocht of commercieel verkrijgbare, goedkope headsets betrouwbaar veranderingen in het muritme kunnen detecteren voor BCI-besturing.
Op weg naar een goedkope muritme-BCI
Eén studie had als doel om een goedkope Emotiv Epoc X te evalueren voor op het muritme gebaseerde BCI. Gezonde deelnemers voerden continue motorische verbeelding of daadwerkelijke teenbewegingen uit terwijl het EEG werd geregistreerd. De onderzoekers gebruikten lineaire discriminantanalyse en support vector machine-classifiers om bewegingstrajecten van niet-bewegingstrajecten te scheiden, waarbij het vermogen in een hoge-alfa/lage-bètaband werd berekend op C3, C4, FC3 en FC4.
De resultaten suggereerden dat het enkele seconden duurde voordat sensomotorische event-related synchronization ontstond voor zowel verbeelding als echte beweging, en de classificatienauwkeurigheid was het hoogst wanneer de analyse zich richtte op het interval van 5–7 seconden na aanvang van de beweging. Als demonstratie bouwde het team een eenvoudige muzikale toepassing waarbij ingebeelde of echte teenbewegingen de toonhoogte veranderden.
Videostimulatieschema's voor BCI-training
Een ander onderzoek testte verschillende videostimulatieschema's om ingebeelde handbewegingen te begeleiden tijdens registraties met een draadloze Emotiv-headset. Zes deelnemers kregen de instructie om zich voor te stellen dat ze hun hand bewogen terwijl ze naar een van de vier videotypen keken.
De resultaten meldden dat een op observatie gebaseerde video — een video die dezelfde actie liet zien die de deelnemer werd gevraagd zich voor te stellen — leidde tot de sterkste gemiddelde desynchronisatie van het muritme. De studie constateerde ook dat extractie van mu-activiteit in het frequentiedomein gevoeliger was voor desynchronisatie dan methoden in het tijddomein.
Realtime patroonherkenning van het muritme
Een derde experiment heroverwoog patroonherkenning van het muritme met behulp van autoregressieve en lineaire classifiers binnen een realtime BCI-kader. Met behulp van BCI2000 en een Emotiv-headset zetten onderzoekers een eendimensionale cursortaak op als biofeedback.
Drie proefpersonen probeerden een bal naar een doel te bewegen door hun muritme te moduleren. De benadering met de autoregressieve en lineaire classifier leverde een gemiddelde doelnauwkeurigheid van ongeveer 76% op, wat een proof-of-concept-overzicht bood van de kenmerken van het muritme in een realtime toepassing.
Deze studies suggereren gezamenlijk dat draagbare EEG-apparatuur voor consumenten taakgerelateerde modulatie van het muritme kan vastleggen in BCI-taken in laboratoria. De onderzoeken zijn echter kleinschalig en de bevindingen zijn voorlopig, wat eerder duidt op haalbaarheid dan op vastgestelde betrouwbaarheid. Het werk markeert vroege stappen in de richting van het vertalen van muritmereactiviteit naar toegankelijke, niet-klinische communicatie tussen brein en computer.
Van motorische resonantie tot emotioneel inzicht
Als mu-onderdrukking louter een laag-niveau motorisch resonantiesignaal zou zijn, zou de relevantie ervan voor complexe sociale cognitie beperkt zijn. Maar er zijn nu aanwijzingen dat sensomotorische simulatie, zoals gemeten door mu-desynchronisatie, bijdraagt aan hogere-orde gevolgtrekkingen over wat andere mensen voelen.
In een tweetal experimenten waarin naturalistische videostimuli werden gecombineerd met continue emotiebeoordelingen, bekeken deelnemers clips van mensen die emotionele levensgebeurtenissen beschreven. Sommige deelnemers zagen de clips met zowel beeld als geluid, sommigen met alleen beeld en sommigen met alleen audio.
Zij gaven van moment tot moment beoordelingen van hoe zij dachten dat de doelpersoon zich voelde, en empathische nauwkeurigheid werd geoperationaliseerd als de correlatie tussen de beoordelingen van de deelnemer en de eigen gerapporteerde emotionele ervaring van de doelpersoon.
De cruciale bevinding was dat rechts-gelateraliseerde mu-onderdrukking over sensomotorische gebieden synchroon liep met empathische nauwkeurigheid. Wanneer deelnemers een sterkere mu-desynchronisatie vertoonden, kwamen hun emotionele gevolgtrekkingen nauwkeuriger overeen met de werkelijke gevoelens van de doelpersoon.
Deze relatie werd gerepliceerd in twee culturele steekproeven, één in de Verenigde Staten en één in Israël, hoewel deze in de Israëlische steekproef specifiek standhield wanneer geïndividualiseerde frequentiebanden werden gebruikt en uitsluitend voor de visuele stimuli.
Het modaliteitsspecifieke effect is theoretisch van belang. Het geeft aan dat sensomotorische simulatie precies dán bijdraagt aan empathische nauwkeurigheid wanneer visuele aanwijzingen — gezichtsuitdrukkingen, gebaren en houdingsinformatie — beschikbaar zijn om de simulatie aan te sturen. Wanneer alleen auditieve informatie aanwezig is, lijken andere neurale systemen de computationele last te dragen.
Deze resultaten tillen de functionele betekenis van mu-onderdrukking ver uit boven laag-niveau motorische resonantie. De sensomotorische cortex lijkt deel te nemen aan het construeren van de rijke, gecontextualiseerde gevolgtrekkingen over de interne toestanden van anderen die de basis vormen van alledaagse empathie. De lateralisatie naar de rechterhersenhelft sluit aan bij bredere bevindingen in de sociale neurowetenschappen die de rechterhersenhelft koppelen aan emotieverwerking en zelf-ander-discriminatie.
Motorische verbeelding en de zoektocht naar betrouwbare BCI-besturing
De responsiviteit van het muritme op ingebeelde bewegingen heeft het tot een hoeksteensignaal gemaakt voor brain-computer interfaces (BCI's) gebaseerd op motorische verbeelding. Deze systemen vertalen de vermogensveranderingen die optreden wanneer een gebruiker zich voorstelt zijn linker- versus rechterhand te bewegen naar besturingscommando's voor externe apparaten. Het principe stelt dat een ingebeelde handbeweging het muritme over de contralaterale sensomotorische cortex onderdrukt, en deze gelateraliseerde onderdrukking kan in realtime worden gedetecteerd en geclassificeerd.
De prestaties van BCI variëren echter aanzienlijk tussen individuen. In een studie uit 2024 vermeldden de auteurs dat een aanzienlijke minderheid van de gebruikers, wellicht 15 tot 30 procent, geen betrouwbare controle kan bereiken, een fenomeen dat BCI-inefficiëntie wordt genoemd. Het identificeren van factoren die prestaties voorspellen, is een aanhoudend doel binnen het vakgebied geweest. Gender is aangedragen als een van die factoren, waarbij sommige eerdere studies suggereerden dat vrouwen mogelijk meer mu-modulatie vertonen tijdens taken met motorische verbeelding.
Het grootschalige onderzoek uit 2024 combineerde vier onafhankelijke datasets om een steekproef van 248 deelnemers met een gelijke genderverdeling samen te stellen, substantieel groter dan enig eerder onderzoek naar deze kwestie. Alle deelnemers voerden een standaard motorische verbeeldingstaak uit met linkerhand versus rechterhand.
De analyse extraheerde de Mu Suppression Index van elektroden die boven de linker en rechter sensomotorische cortex waren geplaatst en vergeleek de waarden tussen vrouwelijke en mannelijke deelnemers. Het resultaat toonde aan dat er geen significant verschil tussen de groepen naar voren kwam. Gender, althans in deze steekproef met voldoende onderscheidend vermogen, voorspelde het vermogen om het muritme te moduleren tijdens motorische verbeelding niet.
Deze nulbevinding heeft praktische implicaties. BCI-onderzoekers en clinici kunnen gender waarschijnlijk terzijde schuiven als screeningsvariabele bij het werven van deelnemers of het selecteren van gebruikers voor systemen gebaseerd op motorische verbeelding. De zoektocht naar betrouwbare voorspellers van BCI-prestaties zal zich wellicht elders op moeten richten, bijvoorbeeld op neurofysiologische eigenschappen, cognitieve strategieën of trainingsprotocollen.
Klinische kenmerken bij stotteren
De dubbele-bandarchitectuur van het muritme maakt het bijzonder geschikt voor het vastleggen van de specifieke neurale tekortkomingen die kenmerkend zijn voor bepaalde klinische stoornissen.
Stotteren vormt een overtuigende casus. De aandoening wordt al lange tijd in verband gebracht met disfunctie in circuits van de basale ganglia die de timing en initiatie van beweging reguleren, samen met verstoorde sensomotorische integratie bij spraakproductie. Mu-alfa, gevoelig voor remmende signalen van de basale ganglia en sensorisch-naar-motorische feedback, en mu-bèta, gevoelig voor timing en voorwaartse modelprojecties, bieden complementaire vensters op deze tekortkomingen.
Bij spraakproductietaken kan onafhankelijke-componentenanalyse muritmes extraheren uit ruwe EEG-signalen en veranderingen in alfa- en bètavermogen koppelen aan de myogene activiteit van de articulatoren. Onderzoeken die deze benadering gebruikten, hebben aangetoond dat mu-alfa- en mu-bèta-activiteit op betrouwbare wijze mensen die stotteren onderscheidt van vloeiende sprekers tijdens zowel spraak- als auditieve discriminatietaken.
De temporele precisie van EEG stelt onderzoekers in staat om waar te nemen wanneer, tijdens de planning en uitvoering van een uiting, de sensomotorische tekortkomingen ontstaan. Een nieuwe bevinding uit een non-woord-herhalingstaak toonde bovendien verminderde mu-alfa-onderdrukking in een stotterende groep vergeleken met een doorgaans vloeiende groep, wat de gevoeligheid van het muritme uitbreidt naar cognitieve domeinen buiten spraak zelf.
Wat het muritme onthult over actie, empathie en hersensignalen
Het verhaal van het muritme is er een van verfijning, waaruit blijkt dat een hersengolf die ooit werd bestempeld als een spiegelneuron-index, in feite rijkere, meer sensorische informatie bevat. Wanneer we iemand zien handelen, weerspiegelt de desynchronisatie die we meten hoe de handeling zou voelen, en niet alleen de motorische commando's; een onderscheid dat de manier verandert waarop onderzoekers sociaal-neurowetenschappelijke data interpreteren.
Persoonlijke motorische ervaring verscherpt deze respons, wat betekent dat het brein zichzelf afstemt om handelingen te herkennen die het fysiek heeft geoefend, wat de geleidelijke opbouw van imitatievaardigheden ondersteunt. Ondertussen voorspelt hetzelfde signaal hoe nauwkeurig mensen emoties aflezen van gezichtsuitdrukkingen in verschillende culturen, wat de relevantie van het muritme veel verder uitbreidt dan alleen beweging op een basaal niveau.
Het muritme behoudt zijn waarde niet door één enkele vaste interpretatie, maar door een groeiende hoeveelheid bewijsmateriaal die steeds beter scherpstelt wat het meet en waarom dat belangrijk is voor de menselijke fysiologie.
Referenties
Coll, M. P., Press, C., Hobson, H., Catmur, C., & Bird, G. (2017). Crossmodal Classification of Mu Rhythm Activity during Action Observation and Execution Suggests Specificity to Somatosensory Features of Actions. The Journal of neuroscience : the official journal of the Society for Neuroscience, 37(24), 5936–5947. https://doi.org/10.1523/JNEUROSCI.3393-16.2017
Cannon, E. N., Yoo, K. H., Vanderwert, R. E., Ferrari, P. F., Woodward, A. L., & Fox, N. A. (2014). Action experience, more than observation, influences mu rhythm desynchronization. Plos one, 9(3), e92002. https://doi.org/10.1371/journal.pone.0092002
Genzer, S., Ong, D. C., Zaki, J., & Perry, A. (2022). Mu rhythm suppression over sensorimotor regions is associated with greater empathic accuracy. Social Cognitive and Affective Neuroscience, 17(9), 788-801. https://doi.org/10.1093/scan/nsac011
von Groll, V. G., Leeuwis, N., Rimbert, S., Roc, A., Pillette, L., Lotte, F., & Alimardani, M. (2024). Large scale investigation of the effect of gender on mu rhythm suppression in motor imagery brain-computer interfaces. Brain computer interfaces (Abingdon, England), 11(3), 87–97. https://doi.org/10.1080/2326263X.2024.2345449
Jenson, D., Bowers, A. L., Hudock, D., & Saltuklaroglu, T. (2020). The application of EEG mu rhythm measures to neurophysiological research in stuttering. Frontiers in human neuroscience, 13, 458. https://doi.org/10.3389/fnhum.2019.00458
Veelgestelde vragen
Wat is het muritme en waarom is het belangrijk in de neurowetenschap?
Het muritme is een ritmische elektrische oscillatie die wordt geregistreerd over de sensomotorische cortex en die in vermogen afneemt wanneer een persoon een handeling uitvoert, observeert of zich inbeeldt. Deze eigenschap, desynchronisatie genoemd, maakt het een belangrijk signaal voor het bestuderen van actie, perceptie en sociaal begrip.
Hoe is het muritme verdeeld in functionele componenten, en wat doet elk daarvan?
Het muritme is verdeeld in een langzamere component en een snellere component. De langzamere component reageert op remmende signalen van de basale ganglia en sensorische feedback, terwijl de snellere component de interne voorspellingen van de hersenen over de sensorische gevolgen van beweging volgt.
Heeft het muritme enig verband met empathie of het begrijpen van de gevoelens van anderen?
Ja, een sterkere mu-onderdrukking over het rechter sensomotorische gebied ging gepaard met een hogere empathische nauwkeurigheid wanneer deelnemers emotionele video's bekeken. Deze relatie hield specifiek stand wanneer visuele aanwijzingen zoals gezichtsuitdrukkingen en gebaren beschikbaar waren, wat aangeeft dat het muritme gevolgtrekkingen over de interne toestanden van anderen ondersteunt.
Kan het muritme worden gebruikt in brain-computer interfaces?
Het muritme is een basissignaal voor op motorische verbeelding gebaseerde brain-computer interfaces, omdat ingebeelde bewegingen een gelateraliseerde onderdrukking veroorzaken die kan worden vertaald in commando's.
Emotiv is een leider in neurotechnologie die helpt om neurowetenschappelijk onderzoek vooruit te helpen met toegankelijke EEG- en hersendatatools.
Medische disclaimer: De informatie op deze website is uitsluitend bedoeld voor educatieve en informatieve doeleinden en is niet bedoeld als medisch of gezondheidsadvies. Deze inhoud kan fouten bevatten en er mag niet op worden vertrouwd om levensveranderende keuzes te maken op het gebied van gezondheid, medische zaken of levensstijl. Vraag altijd advies aan uw arts of een andere gekwalificeerde zorgverlener met eventuele vragen over een medische aandoening of behandeling.
Christian Burgos